光镊原理:一束激光如何夹住一颗细胞
一句话结论:光镊靠强聚焦激光的梯度力把粒子拉向焦点,只有梯度力大于散射力时才能真正抓住它。
一束激光能“夹”住什么
1986 年,贝尔实验室的 Ashkin 和同事把一束激光经高数值孔径物镜强烈聚焦后射入水中,稳稳抓住了一颗微米大小的介电小球。没有机械夹爪,只有光。此后这套装置被叫作光镊(optical tweezers),它的原名更直白:单光束梯度力光阱。
奇怪的地方在于,光明明会推东西。太阳帆、彗尾、辐射计,讲的都是光把物体往前推。既然如此,一束光凭什么反过来把粒子拴在焦点上?这个问题的答案,是光镊全部设计逻辑的起点。
先说清它抓的尺度。光镊处理的通常是几十纳米到十几微米的对象,相当于一根头发丝直径的千分之一到十分之一。这个尺度上,重力的干扰很小,而光能提供的力虽然只有皮牛(1 pN = $10^{-12}$ N)量级,已经足够把一颗细胞拽住、把一根 DNA 分子拉直。
光子确实带动量:从彗尾到辐射压力
要把光镊讲明白,得先接受一件反直觉的事:光有动量。
这个概念不是现代才有的。Kepler 在 1619 年就提出,彗尾总是指向背离太阳的方向,原因是太阳光对彗尾物质施加了压力。Maxwell 在 1862 年从电磁理论出发指出,光作为电磁辐射具有动量,因而会对受照表面产生压力。到了 1900 年前后,Lebedev,以及 Nichols 与 Hull 分别用实验测出了这种压力。辐射压力就这么从猜想变成了可测量的物理量。
单色光的动量由一个干净的关系给出:
$$p=\frac{h}{\lambda}$$
把 $\lambda=1064\ \mathrm{nm}$(生物实验常用波长)代进去:
$$p=\frac{6.63\times10^{-34}\ \mathrm{J\cdot s}}{1.064\times10^{-6}\ \mathrm{m}}\approx6.2\times10^{-28}\ \mathrm{kg\cdot m/s}$$
一颗光子只有 $6.2\times10^{-28}$ 的动量。单个光子推不动任何东西,但一束激光每秒送出的光子数以亿亿计,累计的力就进入了可测范围。
关键要看这些动量怎么被交出去。如果表面完全吸收光,力是
$$F=\frac{P}{c}$$
如果表面完全反射,反射光再带走一份正交的动量,力大致翻倍:
$$F=\frac{2P}{c}$$
做个量纲检查。功率除以速度,$\mathrm{(J/s)/(m/s)}=\mathrm{J/m}=\mathrm{N}$,量纲对得上。数值上,1 W 的光被完全反射时
$$F=\frac{2\times1\ \mathrm{W}}{2.998\times10^{8}\ \mathrm{m/s}}\approx6.7\times10^{-9}\ \mathrm{N}$$
也就是 6.7 nN。换成功率更小的 30 mW 激光、假设被完全吸收,力约 $1.0\times10^{-10}$ N。这正是光镊的处境:力很弱,必须靠聚焦把光斑压小,才能让每平方厘米的光强大到产生足够的力梯度。
散射力把粒子推走,梯度力把它拉回来
光镊里的力其实是两种成分的叠加,作用方向不一样。
第一种是散射力。光子在粒子上被吸收或散射时,把自己的动量交给了粒子,合力方向顺着光的传播方向。粒子因此被推向光束腰的下游,位置略微偏离焦点。只要有光穿过粒子,这股推力就存在,它是光镊必须克服的对象。
第二种是梯度力。它来自光强的不均匀:粒子受到的力指向光强更高的区域。高斯光束越靠近光轴越亮,所以粒子一旦偏离光轴,就会被推回轴心;在轴向,强聚焦后的光强极大值落在焦点,粒子也会被拉向焦点。真正把粒子“握”住的,是这股梯度力。
为什么梯度力会存在?用光线光学看最直观。把粒子当成一枚微型透镜,穿过它的光线发生折射,方向改变意味着动量改变,粒子就受到反作用。粒子偏离焦点时,两侧光线的偏折不对称,合力的方向恰好把它推回光强最强处。这个机制在图上看得更清楚:
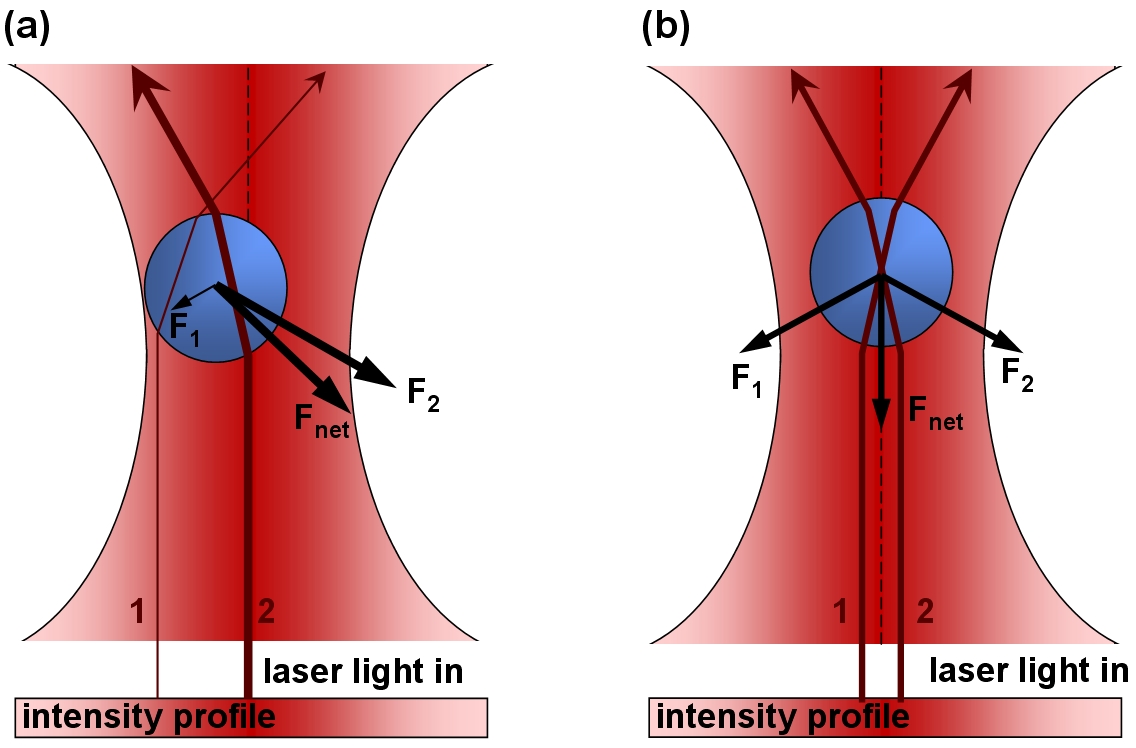
图 1:光线穿过近球形微粒时发生折射,动量方向的改变给微粒一个反作用力;当微粒偏离焦点,两侧偏折不对称,合力把它推回光强最强处。
对远小于光波长的粒子,还能换一套语言。此时粒子近似为一个处于非均匀电场中的点偶极子,满足瑞利散射条件,所受的力正比于光强的梯度。粒子越大越接近波长,光线光学和偶极子图像都不够用,需要完整的米氏散射处理。三种模型的适用边界,由粒子直径与波长的相对大小划开。
为什么必须“强聚焦”:稳定捕获的条件
梯度力的大小取决于光强梯度的陡峭程度,而梯度的陡峭程度由物镜的数值孔径(NA,numerical aperture)决定。光斑压得越小,同样的功率下光强梯度越陡,梯度力就越强;光斑摊得越大,梯度变得平缓,梯度力随之减弱,散射力就占了上风。稳定捕获的判据可以写得很干脆:
$$F_{\text{gradient}} > F_{\text{scatter}}$$
这解释了一件容易被忽略的事:不是随便拿个透镜把激光收一收就能做出光镊。普通透镜的会聚光斑尺寸在几十微米以上,梯度力远小于散射力,粒子只会被顺着光轴推走。要满足上面的不等式,物镜的 NA 通常要做到 1.2 至 1.4,这已经是高倍油浸物镜的级别。聚焦后的光束腰直径可以压缩到接近一个波长,光强梯度集中在极小的体积里,梯度力才足以压过散射力。
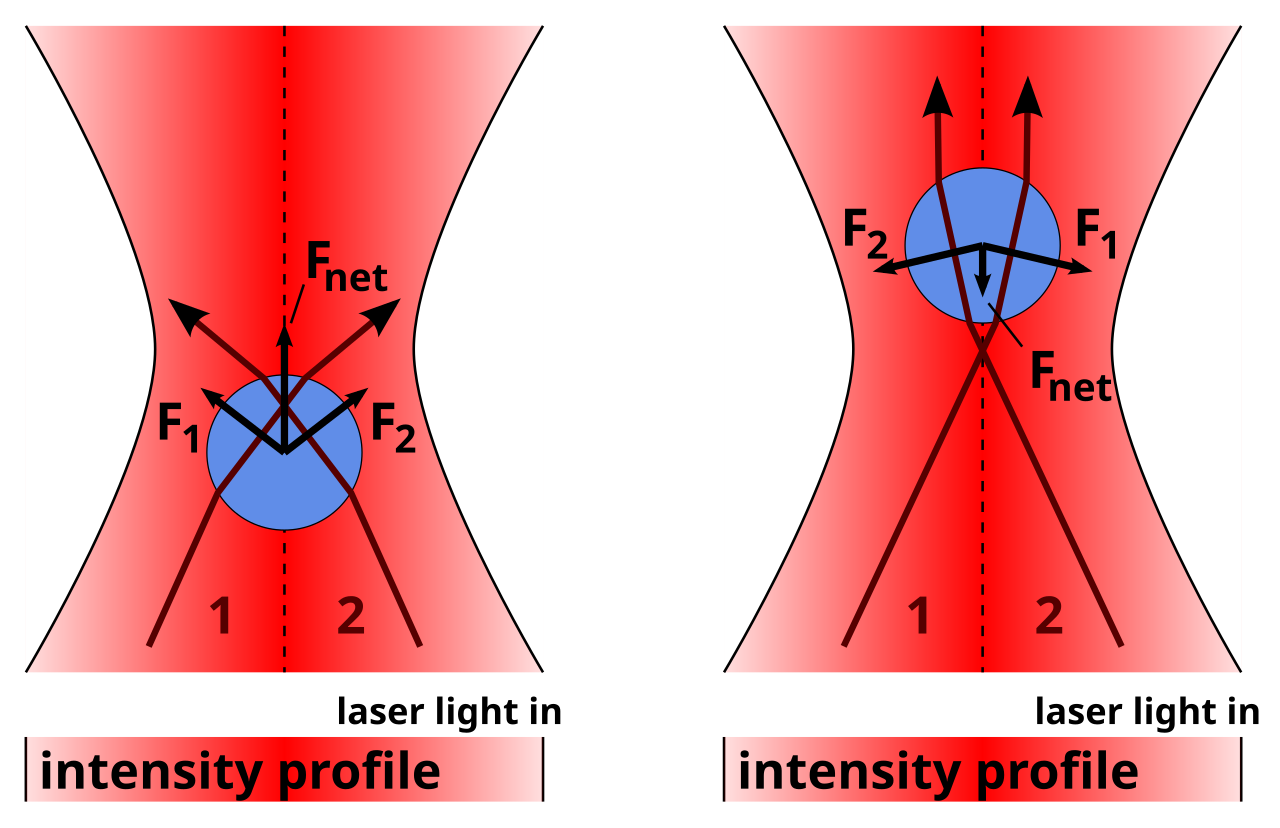
图 2:光束经高数值孔径物镜强烈聚焦,焦点附近的光强梯度最陡,梯度力把微粒约束在焦点周围。
还可以从平衡位置看出散射力的存在。散射力始终沿光轴向前,梯度力在焦点前后反向,两者相加后粒子静止的位置并不在焦点正中,而是略微偏向下游一点点。这个偏移量不大,却是散射力真实存在的直接证据。
一束光只能抓住折射率比周围介质更高的介电粒子,因为折射率高的区域对应更低的光学势能。反过来,如果粒子折射率低于介质,光强最大处反而是它的势能高处,梯度力会把粒子推开,形成的是“反光镊”而不是光阱。这个符号关系决定了光镊能抓什么、抓不住什么。
把光阱当成一根弹簧
对定量测量来说,光镊最有用的性质是:粒子在焦点附近的受力近似线性,就像被一根弹簧拴住。
$$F = k\Delta x$$
这里 $k$ 是光阱刚度,$\Delta x$ 是粒子偏离阱心的距离。这个式子之所以能成立,是因为焦点附近的光强分布近似抛物线型,势能是二次的,力就是线性的。刚度 $k$ 不能凭空假设,必须先用流体力学法(让粒子在已知流速的介质中被拖拽)或热运动分析(记录粒子的布朗运动统计)标定出来,之后才能把测到的位移换算成力。这一步是光镊从“能抓住”走向“能量出多大力”的分水岭。
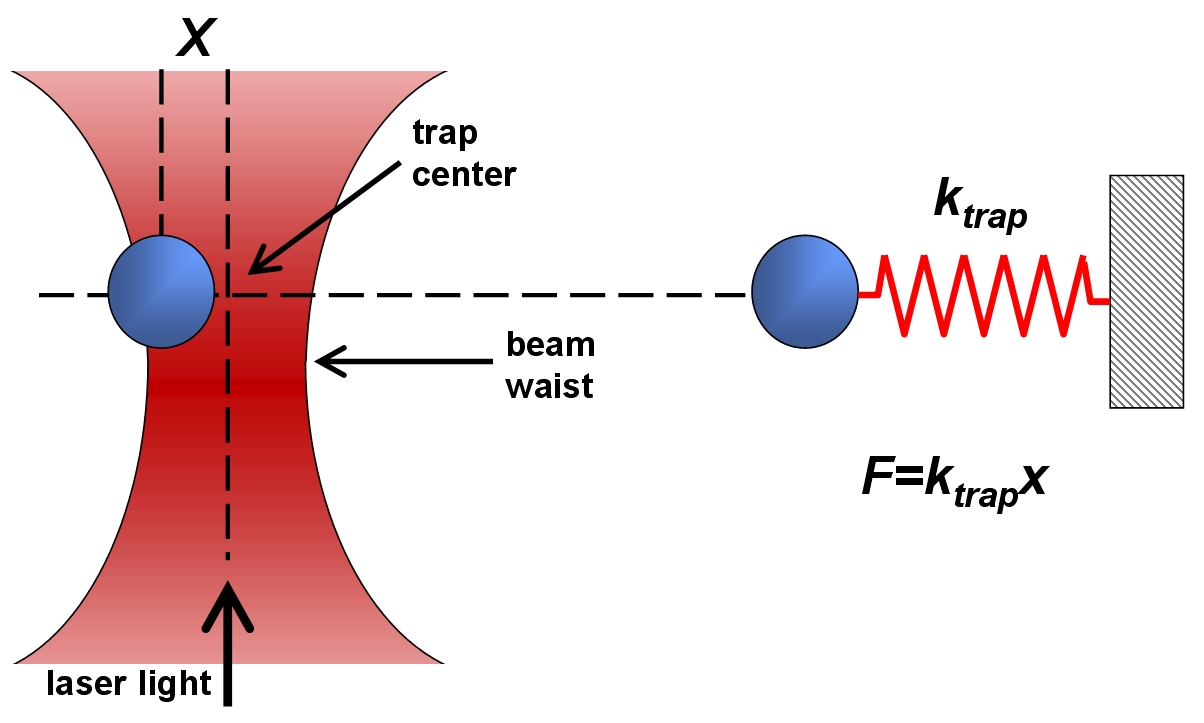
图 3:焦点附近粒子的受力与位移近似成正比,光阱可以等效为一根弹簧,刚度 k 由功率、波长、物镜数值孔径和粒子性质共同决定。
稳定捕获还有一个能量上的门槛。粒子浸在液体里,随时被水分子撞来撞去,热运动能量约为 $k_BT$。室温 300 K 时
$$k_BT \approx 4.1\times10^{-21}\ \mathrm{J}$$
如果光阱太浅,布朗运动一下就把粒子撞跑了。设刚度 $k=1.0\times10^{-4}\ \mathrm{N/m}$(即 0.1 pN/nm),粒子偏离阱心 100 nm 时势能约为
$$U=\frac{1}{2}kx^2=\frac{1}{2}\times1.0\times10^{-4}\times(1.0\times10^{-7})^2=5.0\times10^{-19}\ \mathrm{J}$$
这个数值约等于 $120 k_BT$,比热运动能量高出两个数量级,所以粒子能老老实实待在阱里。阱深和热能的这个倍数关系,是判断一个光阱“稳不稳”的实用标尺。
配套的位置探测也做到了很细的尺度。用四象限光电探测器记录被粒子散射的光斑位移,可以实现亚纳米级的位置追踪,让光镊同时具备皮牛量级的测力分辨率和纳米量级的位移分辨率。单分子实验里那些几百飞牛的台阶,就是这么做出来的。
为什么常用 1064 nm,抓的又是什么样的样品
光镊抓的是活物,波长的选择首先服从“别把样品烤坏”这条约束。
水在近红外波段的吸收比可见光和紫外都弱,而生物样品大部分是水。这是 1064 nm 成为生物光镊常用波长的直接原因:同样功率下,水吸收得少,局部升温小,光损伤随之降低。这个逻辑和“光的吸收”里讲的完全一致,只是换了个应用场景。相比之下,可见光更容易被血红蛋白吸收,还可能通过光解离血红蛋白结合氧而产生活性氧,带来氧化损伤。近红外区间里,970 至 1550 nm 都是常见选择,1064 nm 因为激光器成熟、功率稳定而用得最多。
第二个约束是折射率对比。光镊抓的是相对周围介质折射率更高的介电微粒,比如聚苯乙烯小球、二氧化硅微球、脂质囊泡和细胞。吸收性粒子也能被捕获,但吸收意味着发热,功率要控制得更谨慎。
第三个约束是尺度。直径与波长接近的粒子,米氏散射的贡献很大,散射力强,需要的梯度力也更大;比波长小很多的粒子,力正比于光强梯度与粒子极化率,同样的功率下作用力会显著变小。所以光镊不是“越小越好抓”,而是要在波长、功率、粒子尺寸之间找到配合。
生物医学里它做什么
光镊最擅长的事,是在不接触样品的前提下施加一个已知大小、方向可控的力,同时用显微镜盯着样品看。这个能力在生物医学里被用在了几个层次上。
最先成熟的是单分子力学。分子本身太小,抓不住,常规做法是在它两端各连一颗微球,一颗固定在基底上,另一颗用光镊拉住,然后移动阱心去拉伸分子。DNA 的折叠与解链、蛋白质与 DNA 的结合、马达蛋白走一步要出多少力,都是这么测的。DNA 的持久长度、解链力这类参数,正是从光镊的力与位移曲线上读出来的。
细胞层面则是另一类问题。红细胞的可变形性是它能否通过比自身更细的毛细血管(直径小于 3 μm)的前提,而多种疾病会改变这个性质:疟疾感染让红细胞膜变硬,镰刀型贫血降低红细胞变形性,糖尿病也会增加红细胞刚度。光镊能直接拉伸单个红细胞,把“变硬了没有、硬了多少”变成可比较的数字,这类测量也被用来研究红细胞在储存过程中力学性质如何退化。
再往下是检测。NIST 提出过一种基于光镊的痕量生物检测方案:用光镊捕获一颗表面覆盖特定抗原的微球,把它从铺有对应抗体的表面上拉开,测出拉断键所需的最小力,就能反推样品里抗体的浓度。力的测量在这里取代了传统的光学标记。
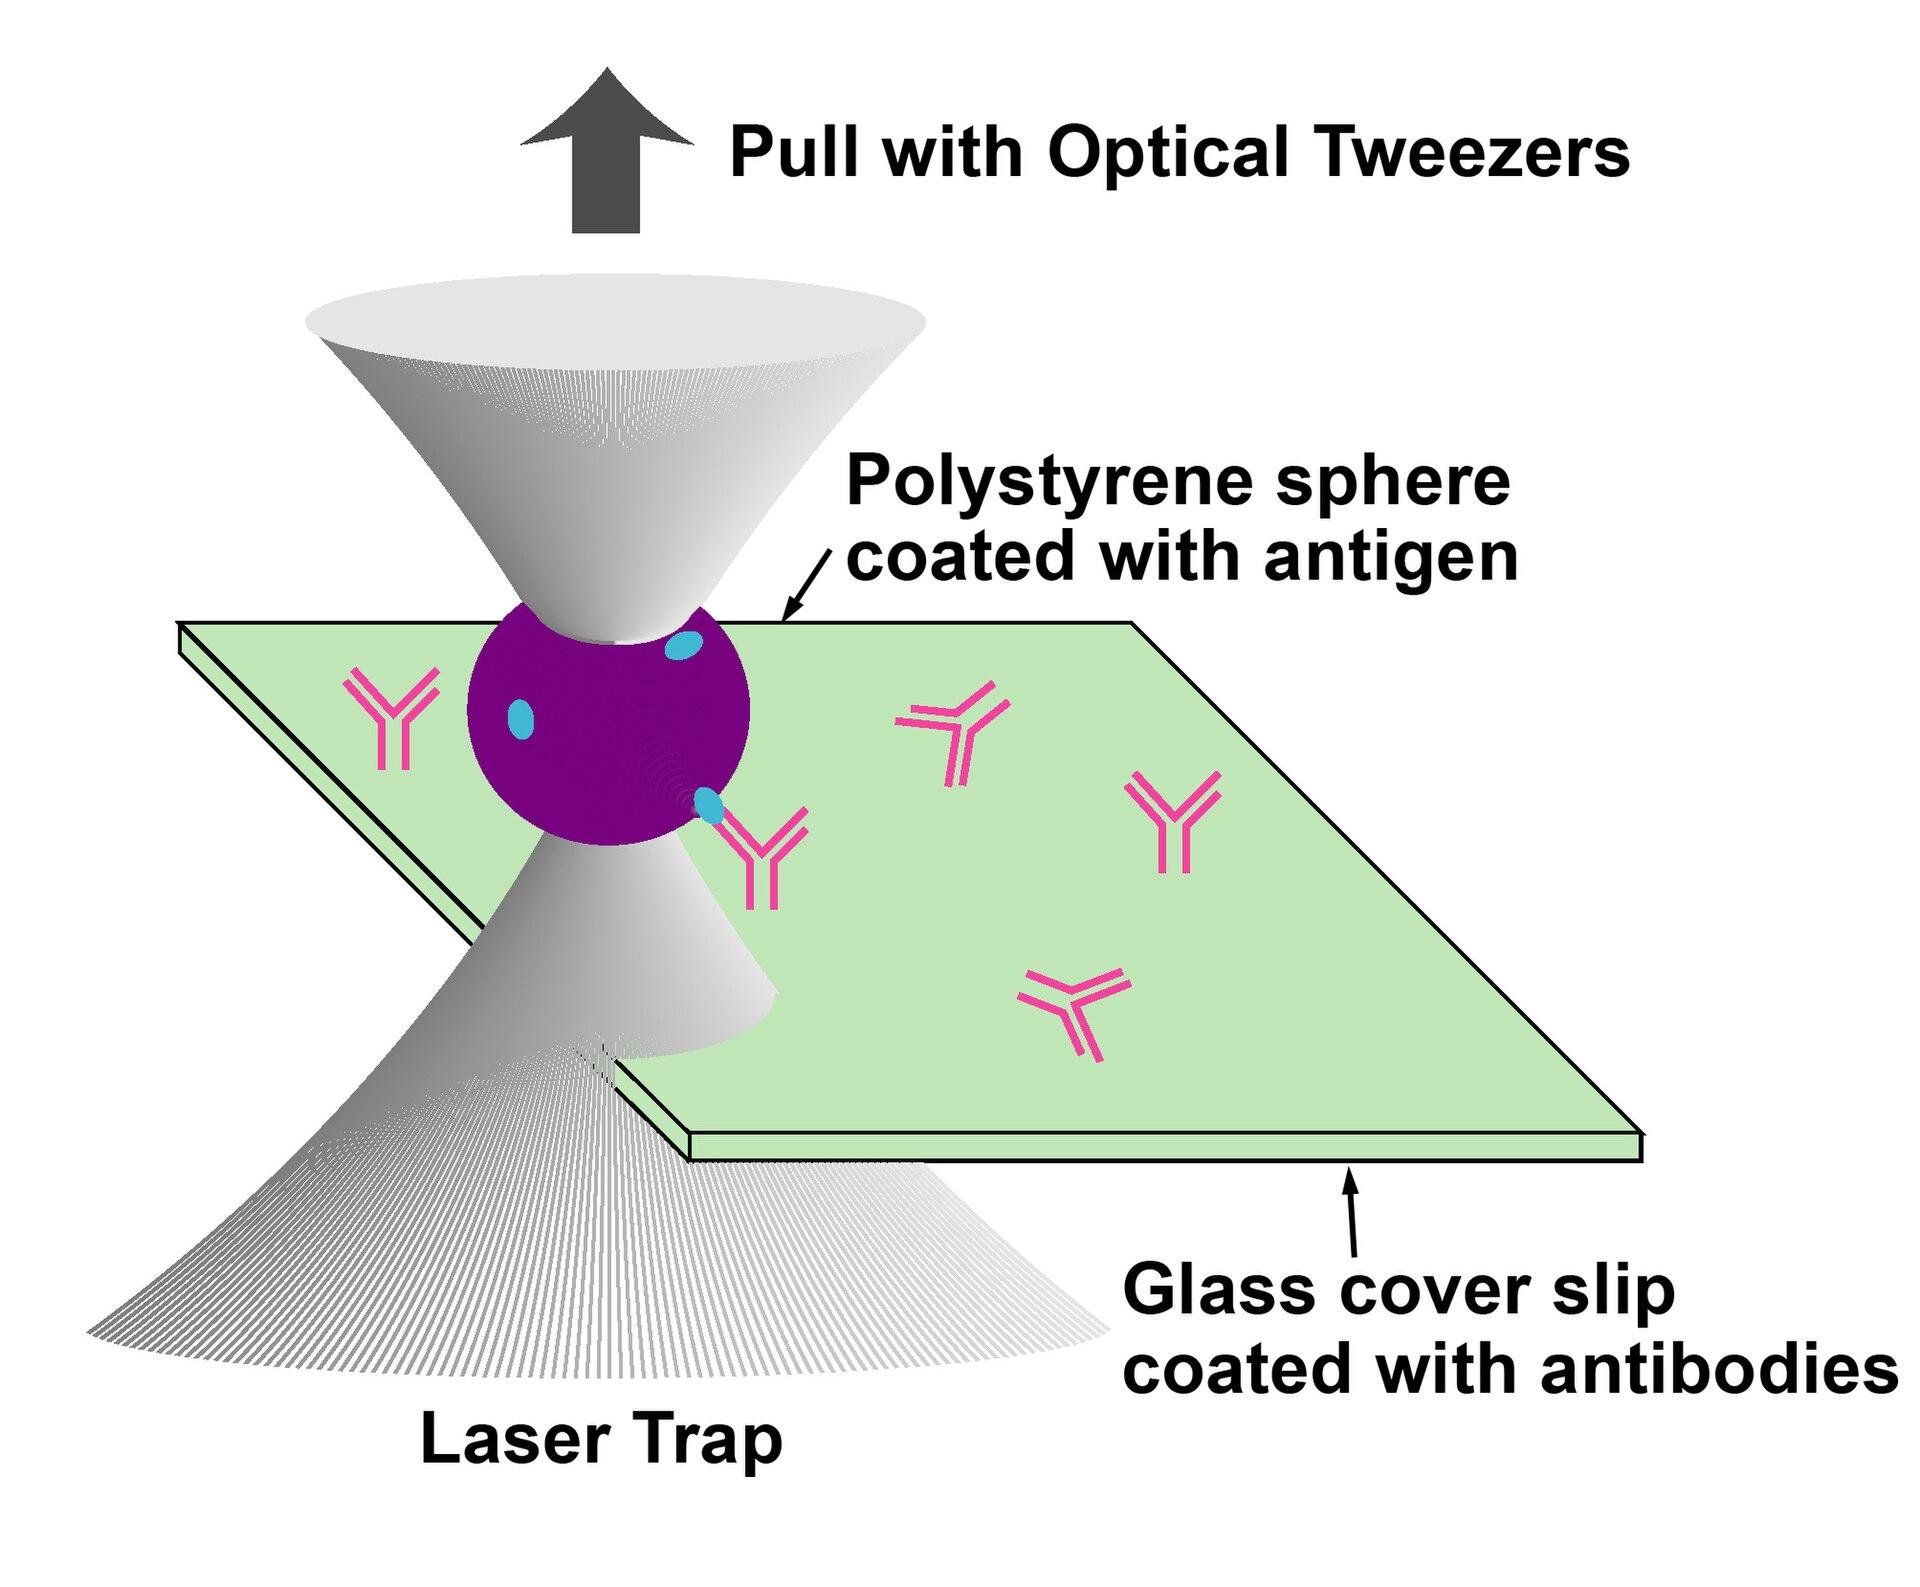
图 4:光镊捕获表面覆盖抗原的微球,将其从铺有对应抗体的表面拉开;拉断键所需的最小力可用来推断样品中目标分子的浓度。
工程上,光镊的构型也一直在演进。前面提到散射力始终在把粒子往前推,于是出现了“拔河式”(tug-of-war)构型:用空间光调制器把一束光分成两路相向传播,让两个方向的散射力互相抵消,梯度力可以专心做约束。这类构型在 20 mW 功率下就能达到约 15 pN 的捕获力,大约是传统双高斯光束光阱的两倍。功率效率上去了,对样品的损伤风险也就跟着降下来。
常见误解
误以为光镊是把粒子“压”在焦点上的。 实际上沿光轴方向的散射力只会把粒子往前推,真正把它约束在焦点附近的是指向高光强区的梯度力。稳定捕获的条件是梯度力大于散射力,而不是靠光压顶住粒子。
误以为光镊会用激光把样品烧坏。 实际上生物光镊通常选在近红外,1064 nm 附近水的吸收很弱,局部升温有限;真正需要防的是可见光被血红蛋白吸收后引发的氧化损伤,而不是激光本身在焦点处“烤”样品。
误以为光镊的力可以“大一点”。 实际上光镊的作用力在皮牛量级,$10^{-12}$ N 上下,比一根头发丝的重力还小好几个数量级,它天生就不是用来搬宏观物体的。它的价值在于力的量级恰好和单分子、细胞膜上的生物力相当。
误以为任何激光、任何粒子都能抓。 实际上只有折射率高于周围介质的介电粒子才会被拉向高光强区;粒子尺寸还必须与波长、功率相匹配。折射率低的反过来会被推开,形成的是反光镊。
参考资料
- Optical tweezers — Wikipedia
- Radiation pressure — Wikipedia
- Arthur Ashkin — Wikipedia
- The Nobel Prize in Physics 2018 — NobelPrize.org
- College Physics 2e, 29.4 Photon Momentum — OpenStax, Rice University
- Plasmonic tweezers: for nanoscale optical trapping and beyond — Light: Science & Applications
- Ashkin et al., Observation of a single-beam gradient force optical trap for dielectric particles, Optics Letters 11, 288 (1986)
- Ashkin, Acceleration and Trapping of Particles by Radiation Pressure, Physical Review Letters 24, 156 (1970)
- Mechanical Characterization in Red Blood Cells Using Optical Tweezers: A Review — Biosensors 16(7), 379 (2026)
- File:Optical Trap Ray Optics Explanation.jpg — Wikimedia Commons(作者 RockyRaccoon,Public domain)
- File:Optical trap focused.svg — Wikimedia Commons(作者 Roland Koebler,CC BY 3.0)
- File:Optical Trap As a Spring.jpg — Wikimedia Commons(作者 RockyRaccoon,Public domain)
- File:Femtomolar Optical Tweezers (5881942888).jpg — Wikimedia Commons(作者 NIST,Public domain)